深度解析医学证据,lxfs.net为你支撑决策
背景介绍
阿尔茨海默病(AD)是一种普遍存在的神经退行性疾病,也是全球痴呆症的首要病因,给全球医疗系统带来沉重的社会经济负担。其发病机制主要由淀粉样蛋白-β(Aβ)肽进行性蓄积为神经毒性寡聚体和斑块所驱动,进而触发氧化应激、谷氨酸稳态失衡、兴奋性毒性和钙失衡的持续级联反应。这些病理事件进一步传播神经元功能障碍,并逐步损害突触完整性和认知功能所需的更广泛信号网络。在这些下游事件中,谷氨酸失调占据核心地位,它不仅介导Aβ诱导的兴奋性毒性,还驱动钙超载和突触损伤。这种兴奋性平衡的持续破坏进一步损害了调控神经传递、神经调节和突触可塑性的神经活性配体-受体相关信号网络,表现为神经营养和神经调节因子(包括脑源性神经营养因子BDNF和神经肽Y NPY介导的神经调节功能障碍)的缺陷,二者均与神经元韧性和认知表现密切相关。尽管抗Aβ单克隆抗体已在临床取得进展,但与大多数研究性疗法一样,它们主要靶向上游Aβ蛋白毒性,不足以逆转下游神经元信号网络的分崩离析。长期Aβ暴露驱动神经信号发生不可逆的适应性改变,意味着即使有效的Aβ清除也无法阻止持续的网络功能障碍。这一局限性凸显了需要能够同时靶向起始Aβ病理及其继发性信号功能障碍的整合治疗策略。纳米材料为多靶点干预提供了机会,但许多平台缺乏同时干预Aβ聚集、氧化还原失衡、兴奋性毒性和信号网络破坏所需的分子可编程性。共价有机框架(COFs)因其高结构可调性、大表面积和精确位点特异性功能化能力而在此背景下特别具有吸引力,这些特性使COFs的合理工程化成为可能,以干扰Aβ聚集、清除活性氧(ROS)并调节疾病相关生物界面。重要的是,生物系统本质上是手性的,立体化学在蛋白质识别、膜相互作用和受体相关过程中发挥基础性作用。因此,将手性引入COF设计为调控其与病理性蛋白组装体和神经元膜的相互作用提供了有前景的手段,为优化多靶点治疗疗效提供了额外结构维度。
研究思路
针对上述挑战,中国科学院宁波材料技术与工程研究所李娟研究员、吴爱国研究员团队提出并构建了手性D-或L-半胱氨酸(Cys)功能化的共价有机框架(COF)纳米颗粒,作为多靶点纳米治疗平台以应对AD病理的多因素性质。两种对映体均能有效抑制Aβ聚集、清除活性氧、降低细胞外谷氨酸水平并减轻钙失调;同时,D/L-Cys-COFs可挽救受损的神经活性配体-受体信号,表现为神经肽Y和脑源性神经营养因子表达的正常化。在转基因AD小鼠中,D/L-Cys-COF治疗显著改善记忆和认知表现。值得注意的是,D-对映体通过增强对病理性胞内钙超载的抑制而提供更优的神经保护,而神经活性配体-受体信号的恢复则保持手性非依赖性。相关内容以Chirality-Functionalized Covalent Organic Frameworks for Enantioselective Neuroprotection with Restored Neuroactive Signaling in Alzheimer's Disease发表在ACS Nano!
图片解析
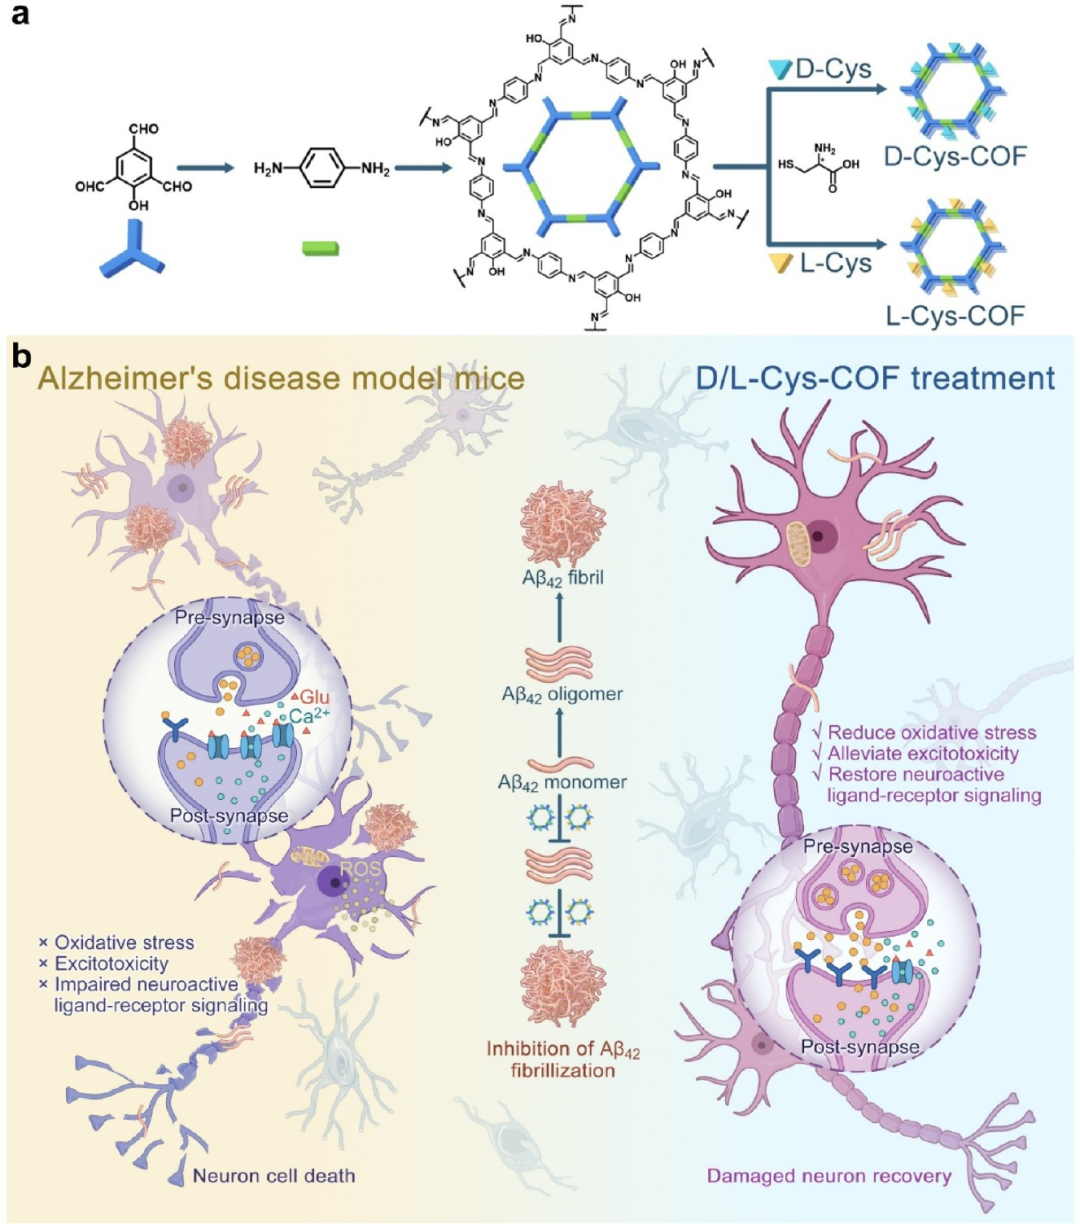
图1. D/L-Cys-COFs的合成策略(a)和神经保护机制(b)示意图:研究从手性D/L-Cys-COF纳米颗粒的设计与制备开始,随后评估其抗阿尔茨海默病的神经保护机制。AD小鼠(左图)病理特征包括Aβ沉积和ROS驱动的氧化应激,共同触发Glu失衡和Ca²⁺超载引起的兴奋性毒性,随后损害神经活性配体-受体并最终导致神经元死亡。D/L-Cys-COFs治疗后(右图),抑制Aβ聚集、清除ROS、通过正常化Glu水平和减轻钙失调缓解兴奋性毒性,并通过正常化NPY和BDNF表达挽救失调的神经活性配体-受体网络,共同促进受损神经元恢复,其中D-Cys-COF因立体选择性效应发挥更优疗效。
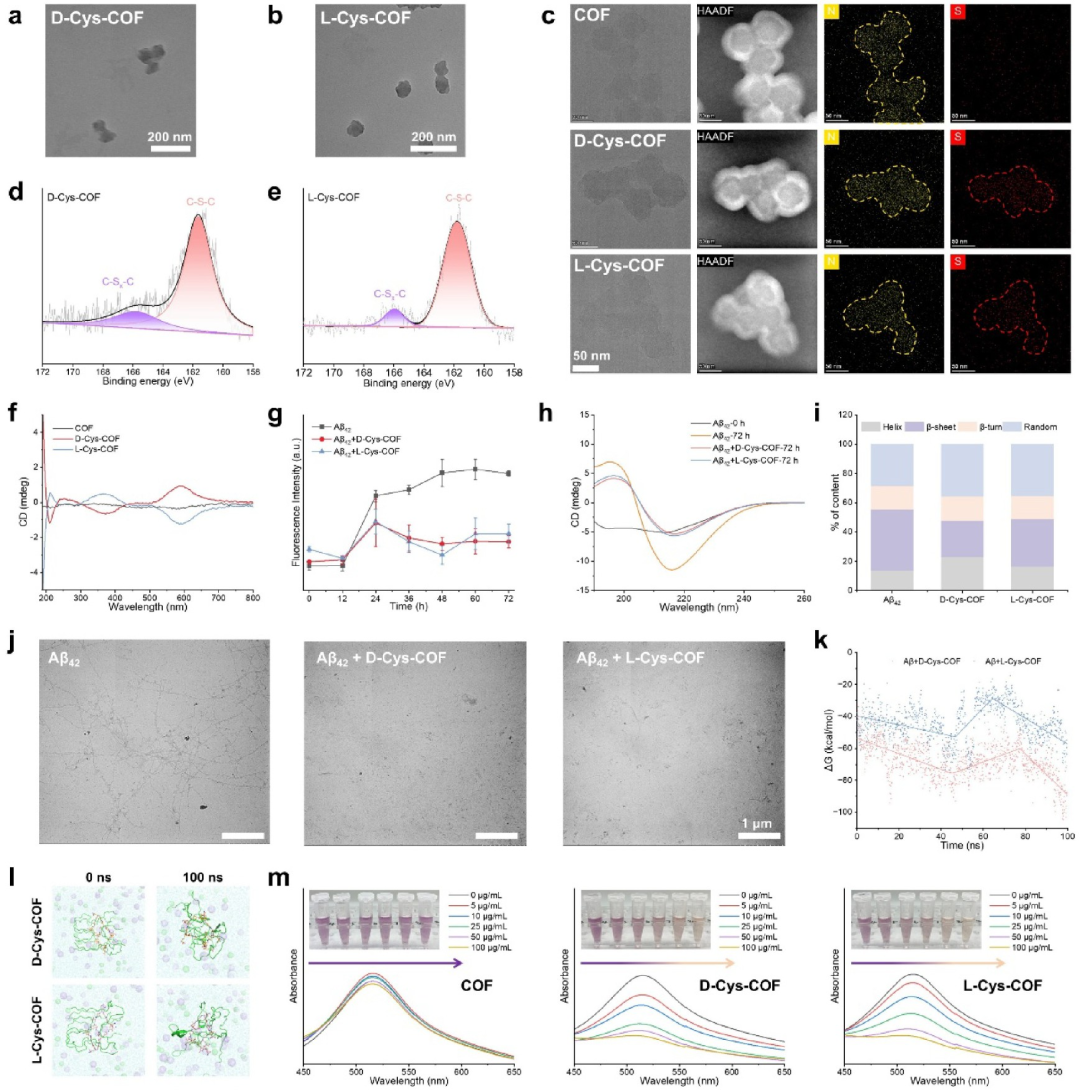
图2. D/L-Cys-COFs的表征及抑制Aβ42纤维化和减少氧化应激的能力:(a,b) D-Cys-COF(a)和L-Cys-COF(b)的TEM图像,比例尺200 nm;(c) COF、D-Cys-COF和L-Cys-COF的EDS mapping图像,显示氮(黄色)和硫(红色)分布,比例尺50 nm;(d,e) D-Cys-COF(d)和L-Cys-COF(e)的高分辨S 2p XPS谱;(f) COF、D-Cys-COF和L-Cys-COF在水中的圆二色谱(CD);(g) ThT荧光动力学监测有无D/L-Cys-COF(5 μg/mL)时Aβ42肽(40 μM)的聚集;(h) Aβ42单体、Aβ42纤维及与D-Cys-COF或L-Cys-COF共孵育72 h的Aβ42纤维的CD谱;(i) 由h中CD谱推导的二级结构含量定量;(j) Aβ42(40 μM)在有无D/L-Cys-COF条件下孵育72 h的TEM图像,比例尺1 μm;(k) 100 ns分子动力学模拟中Aβ42四聚体与D/L-Cys-COF结合自由能的时间依赖性波动;(l) 初始(0 ns)和最终(100 ns)时间点Aβ42四聚体与D/L-Cys-COF复合物的构象快照;(m) D-Cys-COF和L-Cys-COF的自由基清除能力,通过DPPH法测定。
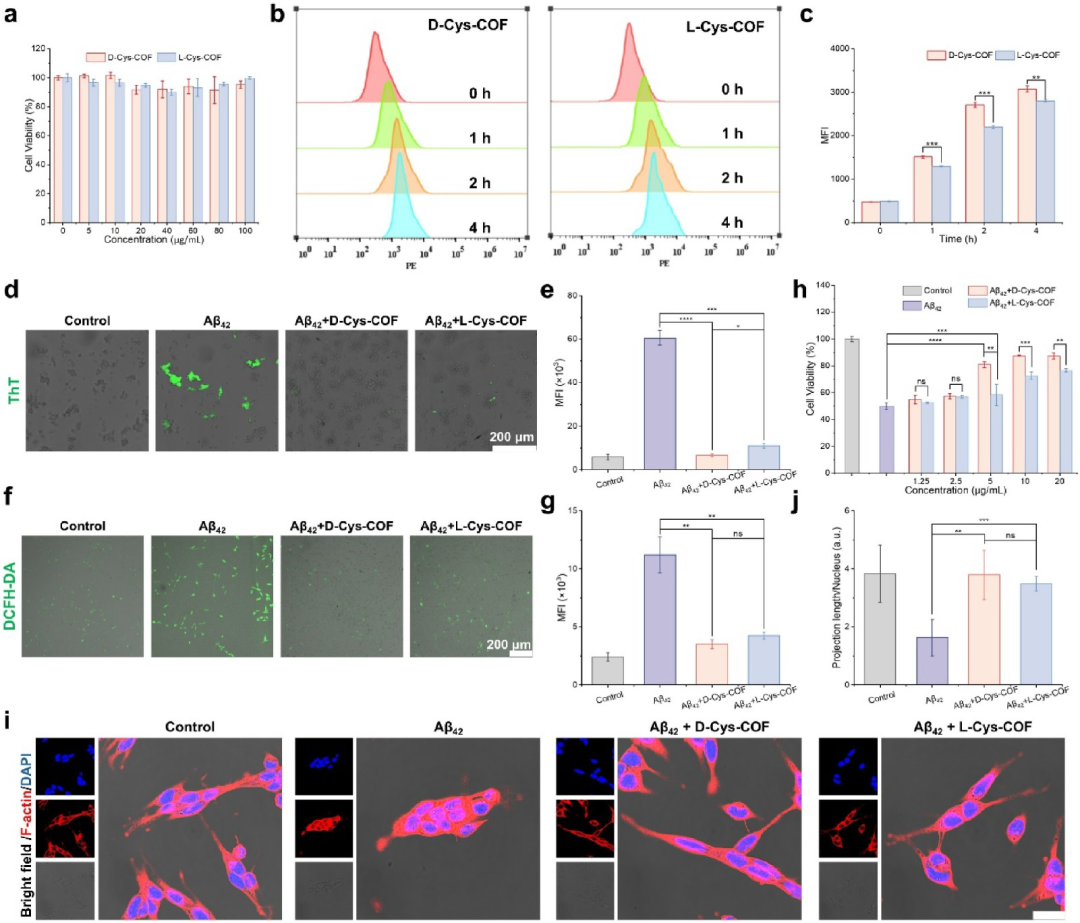
图3. D/L-Cys-COFs对Aβ42诱导的细胞毒性提供对映选择性神经保护:(a) 不同浓度D/L-Cys-COFs处理后SH-SY5Y细胞的活力;(b,c) 流式细胞术分析D/L-Cys-COFs的细胞摄取,显示代表性等高线图(b)和定量分析(c);(d) 不同处理下SH-SY5Y细胞中ThT染色(绿色)Aβ42聚集体的代表性荧光显微镜图像,比例尺200 μm;(e) 由d中ThT平均荧光强度(MFI)定量(ImageJ分析);(f) DCFH-DA(绿色)染色的胞内ROS生成代表性共聚焦图像,比例尺200 μm;(g) 由f中DCF平均荧光定量(ImageJ分析);(h) SH-SY5Y细胞经Aβ42寡聚体(40 μM)联合不同浓度D-Cys-COF或L-Cys-COF处理48 h的剂量-反应神经元挽救曲线;(i) SH-SY5Y细胞的代表性形态学图像,F-actin(红色,罗丹明标记鬼笔环肽),细胞核(蓝色,DAPI),比例尺20 μm;(j) 由i中平均神经突长度定量(ImageJ分析)。
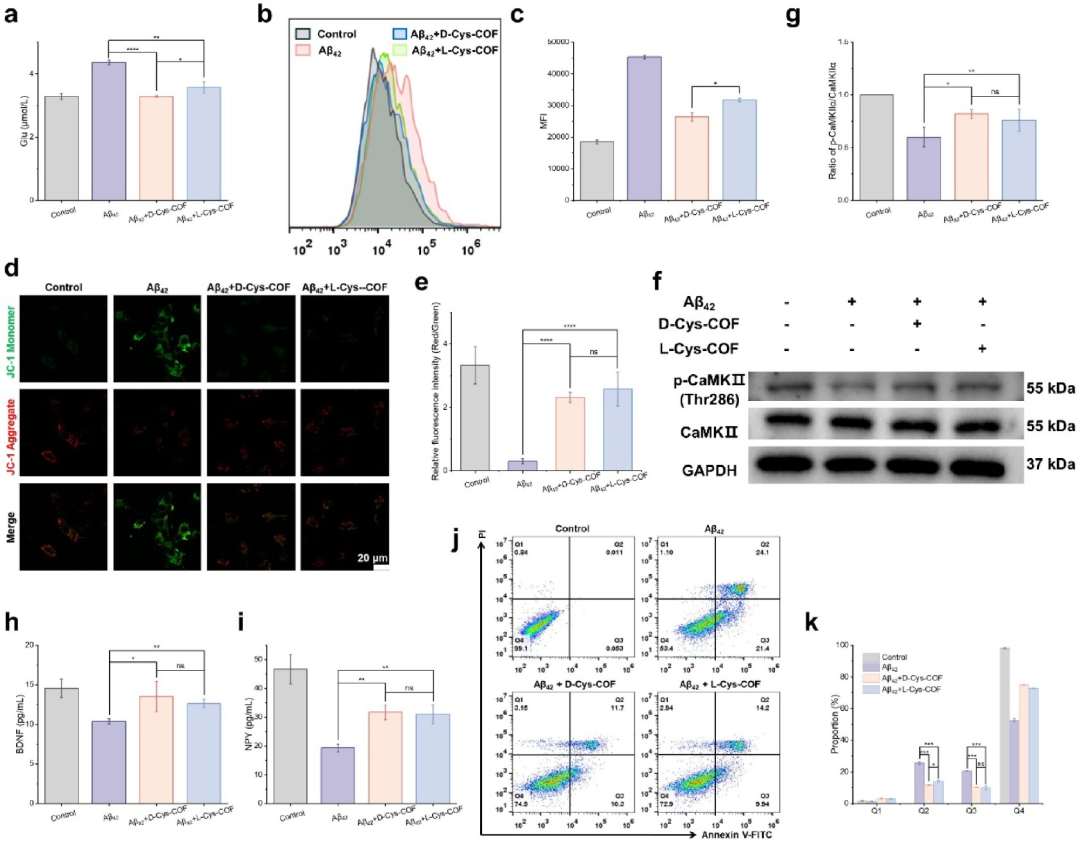
图4. D/L-Cys-COFs通过减少谷氨酸蓄积、减轻钙失调、改善线粒体膜电位及调节NPY和BDNF表达缓解Aβ42诱导的神经元损伤:(a) 共培养体系培养基中的谷氨酸浓度;(b,c) 不同处理下SH-SY5Y细胞的钙水平,显示代表性流式细胞术等高线图(b)和相应定量分析(c);(d,e) 不同处理48 h后SH-SY5Y细胞线粒体膜电位的代表性共聚焦图像,JC-1探针染色(d)及红/绿荧光强度比定量分析(e),比例尺20 μm;(f) 处理后SH-SY5Y细胞中CaMKII和p-CaMKII表达水平的代表性Western blot图像,GAPDH为内参;(g) 由f中p-CaMKII/CaMKII比值定量;(h,i) ELISA法测定共培养培养基中BDNF(h)和NPY(i)浓度;(j,k) 凋亡分析的代表性流式细胞术等高线图(j)及相应定量结果(k)。
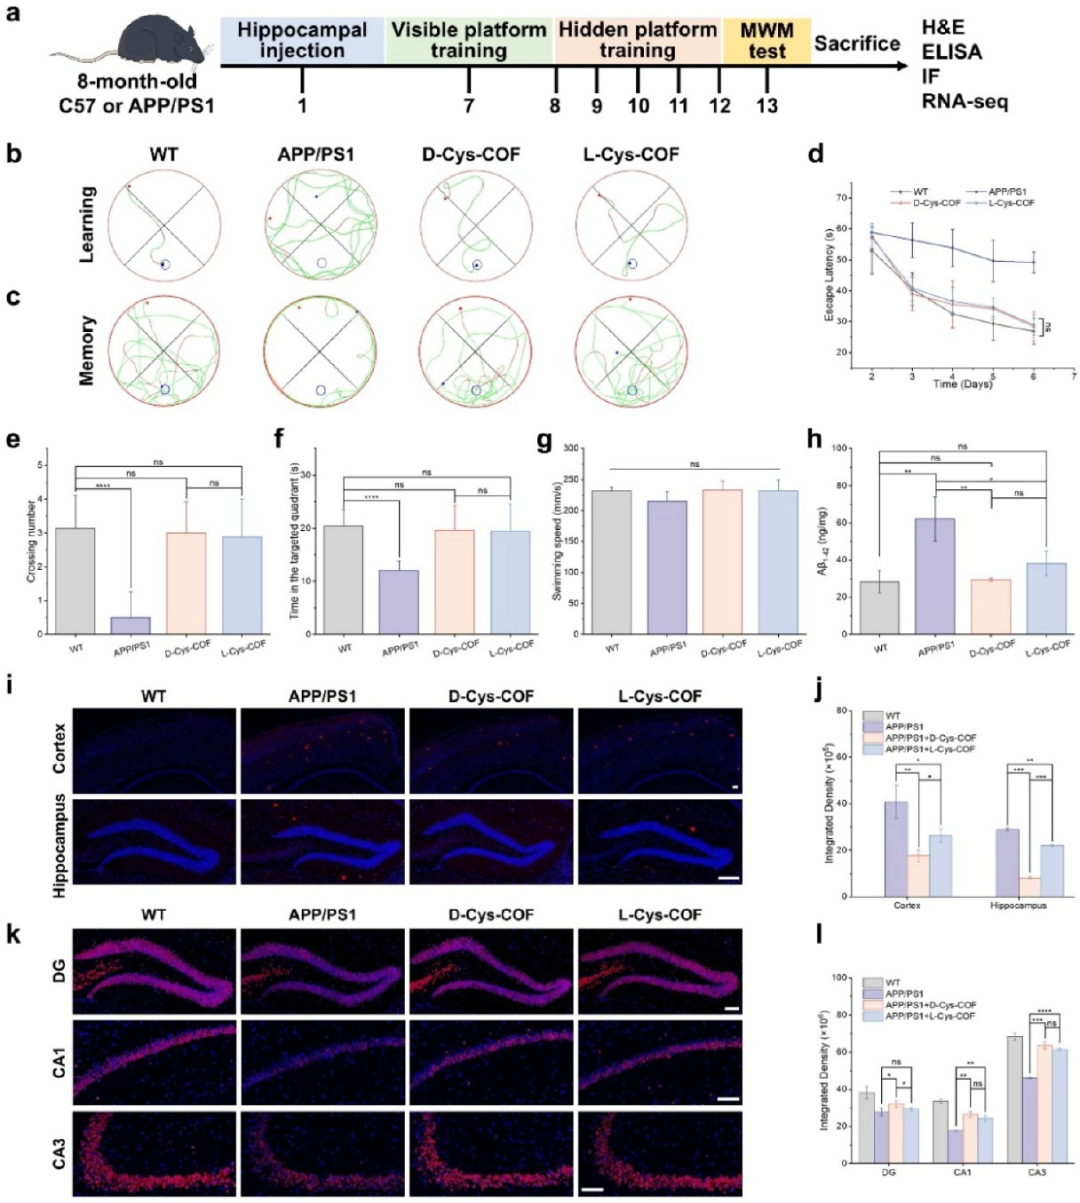
图5. D/L-Cys-COF治疗减轻APP/PS1小鼠Aβ病理并恢复认知功能:(a) 在体内验证D/L-Cys-COF功能效应的示意图时间线和实验设计;(b) 第6天MWM训练中显示逃避潜伏期的代表性轨迹;(c) 撤去平台后试验中小鼠60 s的代表性游泳路径;(d) 四组到达隐藏平台的逃避潜伏期;(e) 试验中穿越平台位置的次数;(f) 四组在各象限的累积停留时间;(g) 每组小鼠平均游泳速度;(h) ELISA法测定脑Aβ42水平;(i,j) 各组皮层和海马Aβ42荧光染色(i)及相应荧光强度定量(j),比例尺100 μm;(k,l) 海马DG、CA1和CA3区NeuN阳性细胞免疫荧光染色(k)及相应定量分析(l),比例尺100 μm。
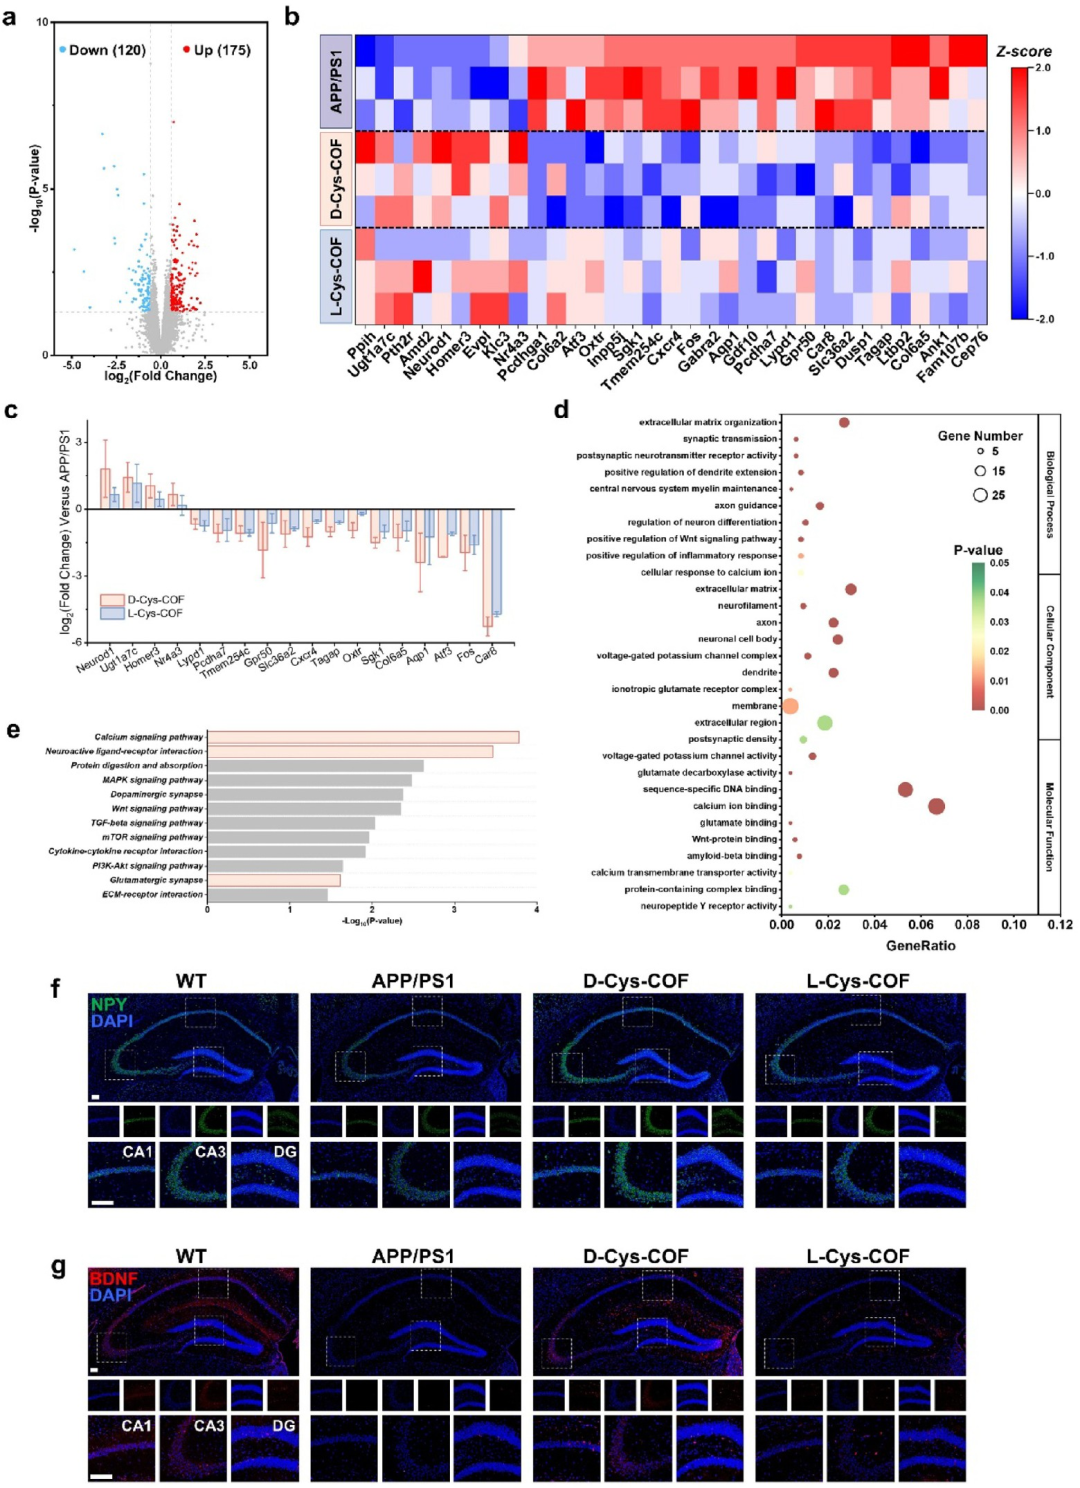
图6. D/L-Cys-COF治疗恢复APP/PS1小鼠神经活性配体-受体系统:(a) L-Cys-COF与D-Cys-COF治疗组间差异表达基因(DEGs)的火山图,红点和蓝点分别代表上调和下调基因;(b) 热图显示D-Cys-COF或L-Cys-COF治疗后相对于PBS处理组在APP/PS1小鼠中共同调控的重叠DEGs;(c) 从b中选择的手性依赖性DEGs,以相对于PBS处理组的倍数变化表示;(d) D-Cys-COF治疗组DEGs的GO富集分析,显示生物过程、细胞组分和分子功能类别中前10个显著富集术语;(e) D-Cys-COF治疗组DEGs的KEGG通路富集分析,显示前12个显著富集通路;(f,g) 海马DG、CA1和CA3区NPY阳性(f)和BDNF阳性(g)细胞的代表性免疫荧光图像,比例尺100 μm。
结论
该研究提出了一种手性驱动策略,将COFs工程化为抗AD的多靶点纳米治疗药物。D/L-Cys-COFs不仅抑制Aβ42聚集和清除ROS,还通过正常化细胞外谷氨酸和减轻钙失调来中断兴奋性毒性级联;此外,它们挽救神经活性配体-受体网络功能障碍,表现为NPY和BDNF表达的正常化。具体而言,D/L-Cys-COFs通过"两步一锅法"合成,呈约85 nm的纳米球形态,硫含量约2 wt%,XPS证实半胱氨酸共价连接,CD谱显示D-Cys-COF在210(-)、365(-)和590(+)nm处有CD峰而L-Cys-COF呈近乎镜像的信号,且在含血清培养基中孵育24 h后特征镜像CD信号基本保留;ThT实验显示D/L-Cys-COFs剂量依赖性抑制Aβ42聚集,CD谱显示显著抑制β折叠形成并增加无规卷曲含量,TEM显示纤维结构被分散的点状组装体取代,ITC显示D-Cys-COF结合亲和力(Kd=6.82×10⁻⁶ M)强于L-Cys-COF(Kd=1.66×10⁻⁵ M),分子动力学模拟显示Aβ42-D-Cys-COF结合自由能更负、结合构象更稳定、氢键相互作用更显著,D-Cys-COF形成更广泛连续的多价界面而L-Cys-COF呈更局域化的接触模式;DPPH实验显示D-Cys-COF和L-Cys-COF的IC50分别约为55和52 μg/mL,而裸COF清除活性弱、游离D/L-Cys在测试范围内未达50%清除。细胞实验中,D/L-Cys-COFs在高达100 μg/mL时几乎无细胞毒性,D-Cys-COF较L-Cys-COF具有更优的细胞膜相互作用;Aβ42寡聚体处理使细胞活力降至49.66±2.38%,5 μg/mL D-Cys-COF和L-Cys-COF分别使细胞活力增至80.93±2.28%和70.35±1.54%,D-Cys-COF的EC50约5.0 μg/mL显著低于L-Cys-COF的13.2 μg/mL。机制上,Aβ42诱导胞内钙信号增加约2.4倍,D-Cys-COF和L-Cys-COF分别使Fluo-4信号降低41%和30%,D-Cys-COF更有效减轻钙失调;Aβ42诱导的凋亡率45.5%±1.0%经D-和L-Cys-COF治疗分别降至22.0±1.8%和24.1±1.5%,D-Cys-COF在抑制晚期凋亡方面更优(从25.5%±0.9%降至11.7%±0.5%,而L-Cys-COF降至14.2%±0.7%)。在APP/PS1转基因小鼠中,双侧海马注射D/L-Cys-COF显著改善MWM行为学缺陷,两对映体在主要MWM终点无显著差异;脑Aβ42水平分别降低约52.38%和38.46%,D-Cys-COF在皮层和海马Aβ42沉积清除及DG区神经元保护方面更优;Nrf2相关免疫荧光信号部分恢复、cleaved caspase-3阳性染色减少;主要器官组织病理学未见异常。RNA测序显示D-Cys-COF治疗诱导285个DEGs(172下调、113上调),L-Cys-COF改变122个DEGs(39下调、83上调),两组直接比较鉴定295个DEGs,33个重叠DEGs中Homer3、Neurod1上调而Cxcr4、Fos、Atf3下调;GO分析显示D-Cys-COF组显著富集于树突延伸、突触传递、突触后密度、突触后神经递质受体活性和钙相关功能,KEGG富集于谷氨酸能突触、钙信号和神经活性配体-受体相互作用通路;qRT-PCR验证与RNA-seq调控方向一致。研究指出,D-对映体的立体选择性优势可能源于胞外和膜界面更强的对映体特异性相互作用(包括与Aβ42更稳定的结合和差异化的膜结合),但其确切受体或离子通道尚待阐明;当前体内研究采用直接海马注射绕过血脑屏障,未来需优化系统给药和主动血脑屏障转运(如用血脑屏障靶向配体或受体介导的转胞吞相关肽修饰COF表面),含末端半胱氨酸残基的肽可能与当前功能化策略特别兼容。总之,该工作确立立体化学作为开发靶向复杂互联疾病通路纳米治疗药物的关键设计参数,通过区分钙失调的对映选择性调控与神经活性信号恢复的共享机制,为超越单靶点范式的精准神经纳米药物开发提供了概念框架。